 Figwise 팀
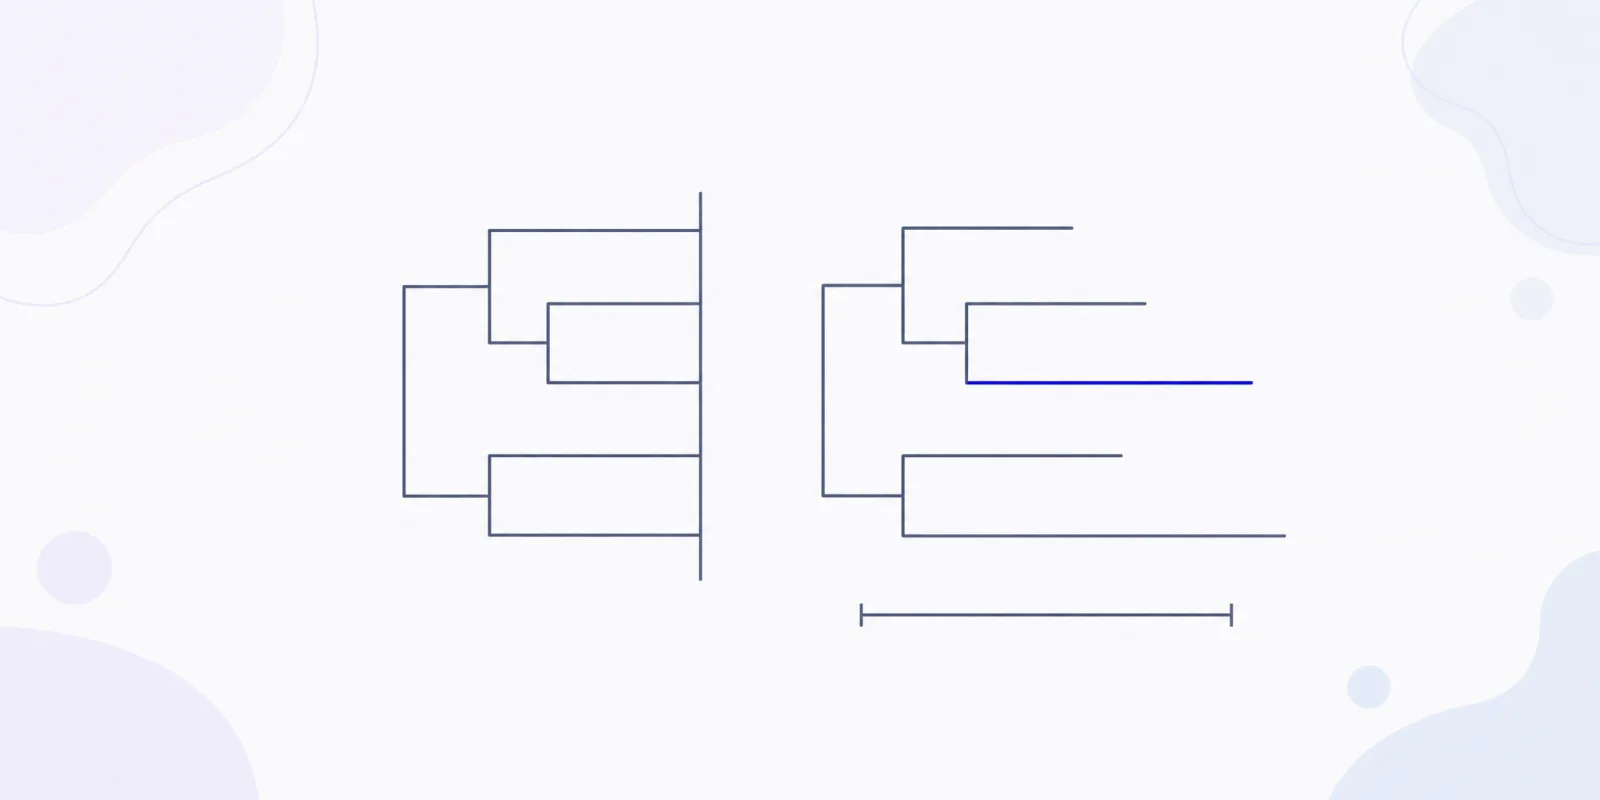
클래도그램과 계통수는 정확히 동일한 분기 패턴을 보여줄 수 있습니다. 차이는 가지에 있습니다. 클래도그램에서 가지 길이는 전혀 정보를 담지 않습니다. 축척된 트리(scaled tree)에서 가지 길이는 데이터입니다. 즉 유전적 변화 또는 시간입니다.
이 한 가지 규칙이 그림에서 주장할 수 있는 범위를 정합니다. 이 주제를 다루는 대부분의 페이지는 여기서 멈추며, 일부는 나머지 내용을 틀리게 설명합니다. 클래도그램은 형질에서 만들어지고 계통수는 DNA에서 만들어진다고 말하는데, 둘 다 어느 자료로도 만들 수 있습니다.
대신 유용한 내용은 다음과 같습니다. 눈앞의 트리가 어떤 종류인지 판별하는 세 가지 확인법, 이를 읽는 네 단계, 그리고 시험 답안과 논문 초고에서 가장 자주 나타나는 여섯 가지 오독입니다.
한 가지 규칙으로 보는 차이
가지 길이는 의미를 가지거나 가지지 않습니다. 나머지는 모두 이 사실에서 파생됩니다.
| 클래도그램 | 파이로그램 | 크로노그램(시간 트리) | |
|---|---|---|---|
| 가지 길이 | 의미 없음 | 변화량 | 경과 시간 |
| 축척 막대 또는 축 | 없음 | "부위당 치환 0.05" | "Ma", "Myr", 년 |
| 말단(tip) | 모두 한 줄에 정렬 | 들쭉날쭉 | 모든 표본이 현재 시점이면 정렬, 표본에 날짜가 있으면 어긋남 |
| 주장할 수 있는 것 | 분기 순서만 | 순서와 변화량 | 순서와 시기 |
T. Ryan Gregory의 오픈액세스 입문서는 클래도그램 규칙을 단호하게 표현합니다. "클래도그램에서 개별 가지의 길이는 어떠한 정보도 전달하지 않는다." 반면 파이로그램은 가지 길이를 "어떤 발산 측정치에 비례하여" 보여주며 "일반적으로 축척 막대를 포함한다."
이 출처가 발산으로 간주하는 것을 주목하십시오. DNA 서열 또는 형태적 형질의 비교입니다. 따라서 데이터 유형은 구분 기준이 아닙니다.
뼈 측정 자료로 만든 최대 절약 트리(parsimony tree)는 파이로그램이 될 수 있습니다. 유전체에서 만든 트리는 가지 길이 없는 클래도그램으로 그려질 수 있습니다. 중요한 것은 그린 사람이 가지에 축척을 적용했는지 여부입니다.
눈앞의 트리를 판별하는 세 가지 확인법
순서대로 실행하십시오. 10초면 그 그림이 무엇을 알려줄 수 있는지 알 수 있습니다.
- 축척 막대 또는 축을 찾으십시오.
0.05로 표시된 짧은 막대는 부위당 치환을 의미합니다. Ma 또는 Myr 단위의 축은 시간을 의미합니다. 막대도 축도 없습니까? 그 그림을 클래도그램으로 취급하고 변화량에 대해 아무것도 주장하지 마십시오. - 말단을 살펴보십시오. 말단이 들쭉날쭉하면 가지가 어떤 값에 축척된 것입니다. 막대가 치환 단위이면 변화량을, 축이 연도 단위이면 시기를 나타냅니다. 말단이 정렬되어 있으면 클래도그램이거나 현재 시점 표본의 시간 트리이므로, 둘을 구분하려면 여전히 확인 1이 필요합니다.
- 캡션의 방법 설명을 읽으십시오. "최대우도, GTR+G, 1000회 부트스트랩 반복"은 실제 가지 길이를 가진 트리를 설명합니다. "12개의 동일하게 절약적인 트리의 엄격한 합의"는 보통 토폴로지만 보고 있다는 뜻입니다.
확인 2에서 사람들은 양방향으로 실수합니다. 말단이 정렬되어 있으면 "길이 정보가 없다"고 느껴지지만, 현생 종의 시간 트리도 모든 표본이 현재에서 왔기 때문에 말단이 정렬되어 있습니다. 그리고 말단이 들쭉날쭉하다고 항상 파이로그램을 의미하지는 않습니다. 화석 보정 트리와 서로 다른 날짜에 수집된 표본의 트리는 말단이 시간 단위로 어긋나 있습니다. 축척이 결정합니다. 부위당 치환인지, 연도인지.
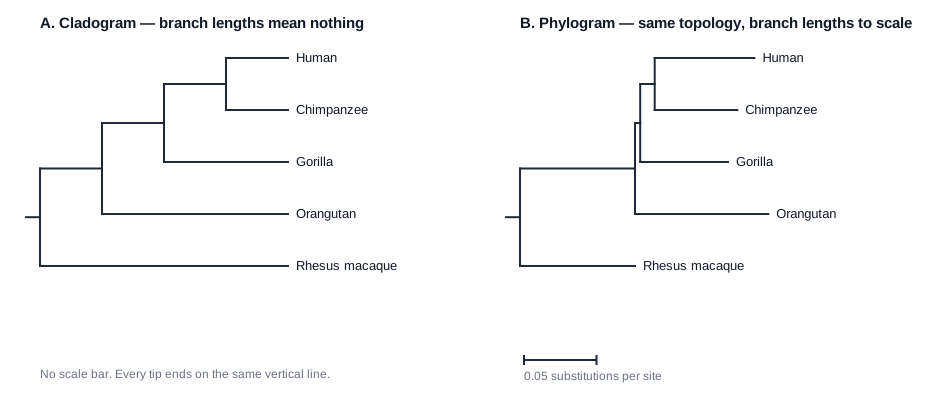
동일한 토폴로지, 두 가지 그림. 두 패널 모두 이 글을 위해 다섯 개 RefSeq 미토콘드리아 유전체의 cytochrome b 코딩 서열로 제가 만든 하나의 이웃 결합(neighbor-joining) 트리에서 나왔습니다. 인간(NC_012920.1), 침팬지(NC_001643.1), 고릴라(NC_011120.1), 오랑우탄(NC_002083.1), 붉은털원숭이(NC_005943.1)입니다. 거리는 Jukes-Cantor 보정을 적용했고, 뿌리는 원숭이 가지의 중간점에 있습니다.
축척된 가지가 실제로 세는 것
파이로그램의 단위는 보통 부위당 치환입니다. 0.05 막대는 정렬된 위치 100개마다 약 5개의 변화를 의미합니다. 두 말단 사이의 총 발산을 구하려면 한 말단에서 공통 조상까지 내려가고 다시 다른 말단까지 올라가는 경로의 모든 가지를 더하십시오.
실제 그림에서 그 계산을 하기 전에 두 가지 주의사항이 있습니다. 아래 표의 백분율은 보정 전 차이인 반면, 그려진 가지는 Jukes-Cantor 보정이 적용되어 둘은 일치하지 않습니다. 그리고 여기서 뿌리는 원숭이 가지의 중간점에 있어 그림에서 그 가지가 반으로 나뉩니다.
위 그림의 실제 수치는 다음과 같습니다. cytochrome b 유전자는 다섯 영장류 모두에서 길이가 1,141염기이며, 정렬할 갭이 없습니다:
| 쌍 | 다른 위치(1,141개 중) | 백분율 |
|---|---|---|
| 인간 vs 침팬지 | 132 | 11.6% |
| 인간 vs 고릴라 | 142 | 12.5% |
| 침팬지 vs 고릴라 | 137 | 12.0% |
| 인간 vs 붉은털원숭이 | 241 | 21.1% |
이 표에서 두 가지가 드러납니다. 인간과 침팬지가 가장 가까운 쌍이며, 이는 널리 인정된 분기 순서와 일치합니다.
그리고 패널 B에서 인간 가지(0.069)는 침팬지 가지(0.057)보다 깁니다. 즉 이 유전자는 분기 이후 우리 쪽에서 더 많은 변화를 축적했습니다. 이것은 파이로그램에서만 할 수 있는 주장입니다. 패널 A는 동일한 토폴로지를 담고 있지만 이를 뒷받침할 수 없습니다.
시간 트리는 반대로 작동합니다. 노드에 시기를 표시하고 진화율 차이를 숨기므로 "이 둘은 약 600만 년 전에 분기했다"라고 읽을 수 있지만 "이 계통이 더 빨리 변화했다"라고는 읽을 수 없습니다. 진화율은 계통마다 다르므로 파이로그램의 가지 길이를 경과 시간으로 절대 읽지 마십시오.
어떤 트리든 네 단계로 읽기
1. 뿌리를 찾은 다음 외집단(outgroup)을 찾으십시오
뿌리는 그림에서 가장 깊은 지점이며, 관계의 그물을 역사로 바꾸는 요소입니다. 트리는 **외집단(outgroup)**으로 뿌리를 내립니다. 외집단은 관심 대상 집단의 바깥에 있지만 정렬할 수 있을 만큼 가까운 집단입니다. Gregory의 입문서는 외집단 종이 "진화 트리에 뿌리를 내리는 데 필요하다"고 말합니다.
여러분의 집단에서 명확히 바깥에 있으면서 가장 가까운 근연종을 고르십시오. 너무 가까우면 집단 안에 속하고, 너무 멀면 긴 가지가 뿌리를 잘못된 위치로 끌어갑니다. 제 그림에서는 원숭이가 네 유인원에 대해 이 역할을 합니다.
표현에 대한 한 가지 주의사항: 외집단으로 가는 가지는 종종 "basal(기저)"이라고 불리는데, Gregory는 독자들이 이를 원시적이거나 조상적이라는 뜻으로 받아들이기 때문에 그렇게 부르지 말라고 조언합니다. 원숭이는 그 트리의 다른 어떤 것의 조상도 아닙니다. 원숭이는 그 뒤에 똑같이 긴 역사를 가진 현생 종입니다.
2. 내부 노드를 종이 아니라 조상으로 읽으십시오
각 내부 노드는 둘로 분기한 하나의 조상 집단입니다. 그것은 자손 중 어느 하나도 아닙니다. 이 오류의 전형적인 예: 고래와 하마는 자매군(sister group)이지만, 그렇다고 고래의 조상이 하마인 것은 아닙니다. Pakicetus 같은 초기 고래 화석은 하마와 전혀 닮지 않았습니다.
같은 논리가 인간과 침팬지에 대한 진부한 질문에 답합니다. 우리는 침팬지의 후손이 아닙니다. 우리는 침팬지와 노드를 공유합니다.
3. 자매군의 이름을 말하십시오
두 말단이 다른 어떤 것도 합류하지 않는 노드에서 만나면 **자매군(sister group)**입니다. 그림에서 인간과 침팬지는 자매입니다. 고릴라는 인간과 침팬지 쌍 전체의 자매이지, 둘 중 하나만의 자매가 아닙니다.
유연관계를 노드 용어로 소리 내어 말하면 대부분의 혼란이 사라집니다. 공유 노드가 더 최근인 쌍이 더 가까운 유연관계입니다. Berkeley의 Understanding Evolution은 이 규칙을 "공통 조상이 진화적 유연관계의 척도다"라고 표현합니다.
4. 노드를 신뢰하기 전에 지지값을 확인하십시오
가지 옆의 숫자는 그 가지가 얼마나 반복 재현 가능했는지를 알려주지, 얼마나 오래되었는지 또는 얼마나 정확한지는 알려주지 않습니다. 기준값은 어떤 방법이 그 숫자를 만들었는지에 따라 달라지며, 서로 바꿔 쓸 수 없습니다:
- **표준 부트스트랩(BS)**은 보수적으로 작동합니다. 초고속 부트스트랩 논문에서 표준 부트스트랩 값 80%는 이미 0.95의 정확할 확률을 가지며, 저자들은 80% 이상의 분기를 신뢰하는 것이 널리 받아들여진다고 설명합니다. 더 오래되고 덜 엄격한 경험칙인 70%는 Systematic Biology 42:182–192에 실린 Hillis와 Bull의 1993년 실험으로 거슬러 올라갑니다.
- **초고속 부트스트랩(UFBoot)**은 거의 불편향이므로 같은 가지에 대해 숫자가 더 높게 나옵니다. IQ-TREE FAQ는 "지지값이 95% 이상일 때만 가지를 신뢰하기 시작하라"고 말하며, BS%와 UFBoot%를 직접 비교해서는 안 된다고 경고합니다.
- SH-aLRT는 UFBoot와 짝을 이룹니다. 같은 페이지는 80% 이상을 권장하며, SH-aLRT ≥ 80%이고 UFBoot ≥ 95%일 때 가지를 확실한 것으로 간주합니다.
- 베이지안 사후확률은 0에서 1까지이며 0.95가 일반적인 기준입니다. 주의해서 읽으십시오. Suzuki, Glazko and Nei는 이 값이 너무 높을 수 있음을 보여주었습니다.
노드에 숫자가 없으면 그 그림은 지지에 대해 아무것도 알려주지 않습니다. 그 위에 논증을 세우지 마십시오.
한 줄씩 알아두면 되는 용어
- 분기군(Clade) — 조상과 그 모든 자손(현생 및 멸종)을 포함하는 집단.
- 단계통군(Monophyletic group) — 분기군. 빠진 것도 없고, 추가된 것도 없음.
- 측계통군(Paraphyletic group) — 조상과 일부 자손. 조류를 제외한 "파충류"가 전형적인 사례.
- 토폴로지(Topology) — 길이를 뺀 분기 패턴 자체.
- 다분기(Polytomy) — 두 개 대신 세 개 이상의 자손 계통이 있는 노드. 보통 데이터가 순서를 해결하지 못했음을 의미.
- 가지 지지값(Branch support) — 부트스트랩 값처럼 가지에 붙는 반복 재현성 점수.
트리가 오독되는 여섯 가지 방식
그림을 읽을 때 자신의 해석을 점검하는 체크리스트로 사용하십시오.
- 말단을 가로질러 읽기. 개구리가 물고기와 인간 중 어느 쪽에 더 가까운지 묻는다면, 대부분의 독자는 옆에 있기 때문에 물고기를 고릅니다. 틀렸습니다. 개구리와 인간은 모두 사지동물이며, 둘 다 경골어류와 동등한 유연관계입니다. 말단 순서는 의미가 없습니다. 모든 노드는 자유롭게 회전할 수 있기 때문입니다. Gregory는 트리를 아기 모빌에 비유합니다.
- 왼쪽에서 오른쪽으로의 진보. 트리에서 어떤 것도 다른 것보다 더 고등하지 않습니다. Berkeley의 trees, not ladders 페이지는 이 습관이 존재의 대사슬(Great Chain of Being)까지 거슬러 올라간다고 설명하며, 어느 계통이 왼쪽에 그려지는지는 임의적이라고 지적합니다.
- 현생 종을 서로의 조상으로 보기. 일반적인 트리의 모든 말단은 동시대입니다. 그중 어떤 것도 다른 것을 만들어내지 않았습니다.
- 노드 수를 세어 유연관계를 서열화하기. 분류군을 추가하거나 제거하면 노드 수가 바뀝니다. Berkeley의 계산 사례: 상어를 추가하기 전에는 양서류와 극피동물을 세 개의 노드가 분리하지만, 추가하면 네 개가 됩니다. 실제 유연관계는 변하지 않았는데도 말입니다.
- 긴 가지를 "아무 일도 일어나지 않았다"로 읽기. 노드가 없는 긴 가지는 기록된 분기가 없는 하나의 계통을 의미하지, 진화를 멈춘 계통을 의미하지 않습니다. 반대 오류도 마찬가지로 흔합니다. 변화는 노드에서만 일어나지 않습니다.
- 클래도그램의 간격 읽기. 큰 간격, 작은 간격, 긴 가지, 짧은 가지 — 클래도그램에서는 그 어느 것도 데이터가 아닙니다.
연습할 수 있는 실제 트리
- Nextstrain의 SARS-CoV-2 빌드에는 TIME과 DIVERGENCE 두 가지 설정이 있는 Branch Length 스위치가 있습니다. 그것을 전환하면 하나의 토폴로지가 시간 트리로, 그다음 파이로그램으로 다시 그려지는 것을 볼 수 있습니다. 차이를 느끼는 가장 빠른 방법입니다.
- Gregory의 Figure 8은 하나의 토폴로지를 클래도그램, 파이로그램, 초계량 트리(ultrametric tree)로 나란히 보여주며 그 근거를 설명합니다.
- NCBI의 Common Tree는 NCBI의 분류체계를 사용하여 종 목록에서 트리를 만듭니다. 분류체계에는 가지 길이가 없으므로 결과물은 토폴로지, 즉 클래도그램입니다.
- TimeTree는 다른 질문에 답합니다. 두 종의 출판된 발산 시기를 반환하며, 이는 크로노그램 영역입니다.
그렇다면 어떤 것을 그려야 합니까?
그림 캡션의 주장과 일치하는 트리를 그리십시오.
- 사건의 순서만 — 클래도그램이 정직하고 읽기 쉽습니다.
- 한 계통이 더 많이 변화 — 축척된 가지와 축척 막대가 필요합니다.
- 분기 시기 — 시간 축과 논증을 담당하는 노드의 지지값이 필요합니다.
어떤 것을 선택하든 메커니즘은 동일한 세 가지 입력입니다. 토폴로지, 선택적 가지 길이, 라벨입니다. 저희 계통수 생성기는 Newick 문자열 또는 단순한 종 목록을 받아 SVG 또는 PNG로 내보냅니다. 길이 없는 Newick을 입력하면 진정한 클래도그램을 얻습니다. 말단이 정렬되고, 축척 막대가 없으며, 데이터가 뒷받침하지 않는 어떤 것도 암시하지 않습니다. 트리가 요약 그림의 한 패널이 된다면 그래픽 초록 생성기가 그 레이아웃을 처리합니다.
제출 전에 정리해야 할 한 가지: 그림의 어떤 부분이든 AI 도구에서 나왔다면, 목표 저널이 공개하도록 요구하는 사항을 확인하십시오. 현재 규칙을 AI 생성 그림과 저널 정책에 모아 두었습니다.
FAQ
클래도그램은 계통수입니까?
네, 계통수의 한 종류입니다. 분기 순서만 보여주는 종류입니다. 많은 생물학자가 두 용어를 혼용하는데, 그래서 캡션의 라벨을 믿는 대신 위의 세 가지 확인법을 실행할 가치가 있는 것입니다.
클래도그램은 시간을 보여줍니까?
아닙니다. 가지 길이도, 간격도, 말단의 순서도 아닙니다. 축도 축척 막대도 없는 그림은 시간이나 변화량에 대해 아무것도 주장하지 않습니다.
외집단은 어떻게 선택합니까?
모두가 여러분의 내집단(ingroup) 바깥에 있다고 동의하고, 안정적으로 정렬할 수 있는 가장 가까운 집단을 고르십시오. 그다음 그것이 내집단 안에 들어오지 않았는지 확인하십시오. 만약 들어왔다면, 여러분의 내집단은 생각했던 것과 다른 것입니다.
부트스트랩 값은 어느 정도면 충분합니까?
표준 부트스트랩의 경우 80% 이상이 일반적인 기준이며, 70%는 더 오래되고 약한 기준입니다. 초고속 부트스트랩의 경우 95%를 사용하십시오. UFBoot 값과 표준 부트스트랩 값을 같은 척도로 옮기지 마십시오.
두 종이 말단에서 나란히 있습니다. 가까운 근연입니까?
반드시 그런 것은 아닙니다. 어떤 노드를 회전해도 트리는 동일하게 유지되면서 말단 순서가 바뀝니다. 두 말단을 따라 내려가 만나는 노드를 찾고, 그 노드를 다른 대안들과 비교하십시오. 그것이 유일한 검증 방법입니다.